科学网—针对还原应激的细胞改善策略取得进展
 精选
已有 296 次阅读
2026-11-8 07:46
| 系统分类: 海外观察
氧化应激问题在生命科学领域广泛受到重视,其实还原应激同样存在且重要,氧化还原平衡紊乱必然存在氧化过度,也存在还原过度。对氧气普遍存在,氧化及其重要的细胞来说,氧化应激容易发生,但还原应激也必然存在。由于还原应激的研究受到环境因素的影响,一直相对比较少见,但也正是其重要性的必然特点。
解除应激反应制动 的 小分子改善线粒体病变细胞存活能力
作者: Ramanujan S. Hegde
相关研究原文: Stimulated protein degradation to promote mitochondrial function and neuronal survival(Srividya Chandrasekhar 等,《Science》同期)DOI:10.1126/science.aem1560
细胞内生化过程高度动态,能够快速响应环境或胞内扰动。许多这类刺激会启动应激通路,共同提升细胞韧性与存活能力 (1)。应激信号通路是极具潜力的治疗靶点:应激信号不足或过度激活,均与神经退行性疾病、肿瘤等多种疾病相关(2)。本期509页,Chandrasekhar团队(3)报道发现一种小分子,可激活一条线粒体稳态应激通路顶端的泛素连接酶。该小分子能够改善线粒体电子传递链(能量生成核心通路)致病突变模型细胞的状态,为这类复杂疾病的治疗提供新思路。
Chandrasekhar等人聚焦 还原应激 : 细胞氧化能力不足,无法支撑蛋白折叠、氧化还原信号、代谢等核心生命活动(4)。还原应激应答的关键效应分子是一个泛素连接酶复合物,其底物识别亚基为FEM1B(fem-1同源蛋白B)(5)。含FEM1B的连接酶可给底物加上泛素链,标记底物使其降解。FEM1B的全部靶蛋白尚未明确,其中一个关键底物是FNIP1(滤泡蛋白互作蛋白1);FNIP1降解后,会促进线粒体耗氧与活性氧生成,提升细胞氧化能力、缓解还原应激。
研究团队设想,药物激活 FEM1B连接酶或许具备治疗价值,于是寻找FEM1B激动剂。已有研究表明,FEM1B平时受BEX(脑表达X连锁蛋白)抑制:BEX结合并占据其底物识别位点(6)。FEM1B第126位精氨酸(R126)突变后,不再结合BEX,但仍能识别底物,形成持续激活态。受该突变启发,团队筛选得到一种可穿透细胞、置换BEX的小分子BD2;BD2结合FEM1B,选择性稳定其激活构象。实验证实BD2促进FNIP1(及其他底物)降解,且该效应依赖FEM1B定位在线粒体表面。
尽管药物激活 FEM1B所带来的全部生化与功能效应仍有待完整阐明,Chandrasekhar等人证实:BD2可促进线粒体蛋白导入、增加线粒体复合物IV组装、加快电子传递链通量,表型和FEM1B持续激活突变R126A(A为丙氨酸)的细胞高度相似。值得关注的是,**电子传递链末端受体——复合物IV组装缺陷的细胞,可通过R126A突变或BD2处理改善存活状态**。BD2的保护效应在多种复合物IV缺陷的人类疾病细胞模型中得到验证,包括弗里德赖希共济失调(一种神经退行病)。而电子传递链上游复合物缺陷、或是其他类型细胞应激的细胞,无法从BD2获益;说明BD2的作用特异性针对复合物IV功能异常所引发的还原应激。
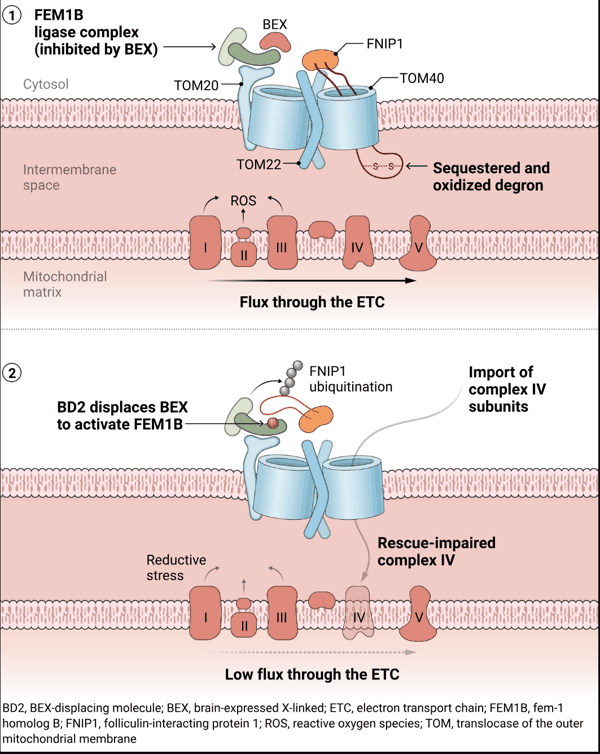
> 线粒体还原应激应答示意图
> (1)活性氧正常生成时:FEM1B泛素连接酶处于静息状态,氧化型FNIP1封堵TOM40导入通道;
> (2)部分疾病状态下,电子传递链复合物IV受损,活性氧水平下降,诱发还原应激。FNIP1从TOM40通道脱出,被FEM1B标记降解;空出的TOM40通道提升蛋白导入效率,帮助恢复电子传递链功能。BD2通过置换FEM1B上的BEX蛋白,启动该应激应答。
> 图源:N. BURGESS / SCIENCE
细胞存活改善的精确机制仍需深入研究。线粒体前体蛋白导入增强,一般认为是线粒体外膜上更多导入通道被释放所致 (7)。FEM1B与FNIP1大量分布于细胞核与细胞质,但其中一部分会和线粒体导入受体TOM20、TOM22发生相互作用(见图)。FNIP1带有长段无序富半胱氨酸结构域,可能部分穿过外膜导入通道进入膜间隙,并通过二硫键被“卡住”。该假说具备合理性:很多小型无序富半胱氨酸蛋白都以此方式进入膜间隙,而在还原环境下会重新漏回胞质(8)。
因此在还原应激条件下, FNIP1的二硫键被还原,含半胱氨酸的降解信号肽(degron)从导入通道脱出,从而被FEM1B识别。该模型解释了一个难题:位于胞质的降解信号,如何感知线粒体内部活性氧水平。持续还原应激下,FNIP1的降解区会逐步把BEX从FEM1B上挤开,进而实现FNIP1泛素化、降解,释放导入通道。这种依赖蛋白定位变化的还原应激激活模式很有吸引力,其他线粒体应激通路同样常以蛋白导入受阻作为启动信号(9–11)。
BD2置换BEX后,降低了FEM1B识别FNIP1的阈值;即便还原态FNIP1短暂暴露,也能触发降解,改善线粒体蛋白导入与功能。释放导入通道未必是BD2唯一机制:FEM1B还有其他底物(3,7,12),它们在线粒体稳态中的作用尚不明确。此外FNIP1及其同源蛋白FNIP2是滤泡蛋白(FLCN)的必需结合伙伴,该复合物缺失会促进线粒体新生(13),因此BD2改善线粒体功能,也可能部分经由这条通路实现。
靶向应激通路的治疗价值仍存在不确定性,不同细胞对这类通路的利用模式差异很大 (2)。例如未折叠蛋白感受器PERK的抑制剂,在部分组织、特定场景下有益;但PERK抑制会复刻Wolcott‑Rallison综合征(PERK缺失诱发胰腺退变、糖尿病),带来严重副作用。
值得警惕:模拟 BD2效应的FEM1B持续激活突变R126Q(Q为谷氨酰胺),在人体内会导致神经发育疾病(14)。所以,尽管这条调控关键应激通路的泛素连接酶激动剂的发现令人振奋,但距离转化为难治疾病的疗法,还有大量障碍。
不少泛素连接酶都受分子内或分子间相互作用的自抑制调控,这套解除抑制的精巧策略或许具备更广适用性。 Parkin是极具潜力的候选靶点(15):它的抑制-激活机制已有大量结构数据,有助于开发安全有效的激动剂。激活Parkin可通过自噬清除受损线粒体,该通路被认为对帕金森病有益。参与质控的泛素连接酶同样是很好的激活靶点,它们可以清除衰老、疾病过程中不断累积的多种毒性蛋白。其中很多质控连接酶属于HECT家族,普遍存在自抑制,理论上可以采用和BD2相似的“去抑制”思路。这类工具化合物有助于寻找适宜场景——和BD2作用于FEM1B复合物一样,找到“降低连接酶激活阈值”能够产生治疗收益的疾病。
转载本文请联系原作者获取授权,同时请注明本文来自孙学军科学网博客。 链接地址: https://blog.sciencenet.cn/blog-41174-1558831.html
上一篇: 蜜蜂依靠双冲程螫针注射毒液 下一篇: “僵尸细胞”难题有望克服 欢迎参加科学网十佳博文评选活动! 主办单位:  支持单位: