科学网—“生命充满海洋”的历程(2)
 精选
已有 172 次阅读
2026-10-10 07:18
| 系统分类: 科研笔记
“生命充满海洋”的历程(2)
多细胞生物诞生、从浅海有光底栖生境扩散到深海黑暗底栖生境
张武昌 2026年10月10日星期六
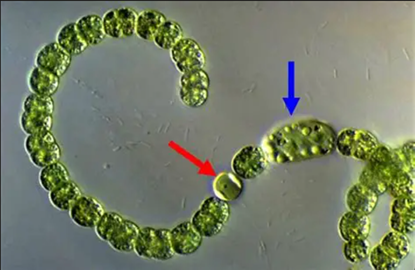
原核生物没有线粒体,细胞膜是唯一产能场所,因此能量产出的天花板很低。就算凑成丝状群体,也很难供养起一套复杂分化系统,很难做到一部分细胞牺牲自身繁殖,服务整个个体。原核生物(细菌、古菌)可以聚成长串、成片的群体,少数种类丝里还有专门固氮的异形胞,算是有一点点分工,是唯一接近分工的特例,但它依然算不上多细胞生物。原核止步于细胞群体,跨不过这道门槛,根源是能量限制。
例如典型的光合自养细菌蓝细菌(蓝藻),它能做光合作用,但它是原核生物,没有被膜包裹的叶绿体细胞器,光合色素、反应中心都分布在细胞膜向内折叠形成的膜片层上,
最典型的群体生活类群是丝状蓝细菌,它们细胞连成一条长丝,看起来像多细胞,整条丝如果断开,普通营养细胞大多还能单独生存,只是丢掉了固氮功能。没有形成一套互相依赖、不可拆分的细胞组织体系,没有多种分化细胞构成的固定个体。
叶绿体是 真核生物专属 的细胞器,是远古蓝细菌被真核细胞内共生之后演变出来的。自由蓝细菌是独立的单细胞,它要分出大量能量用于维持自身完整生存、繁殖、抵御环境波动。一旦被真核细胞内共生变成叶绿体,它就不用再操心细胞膜、运动、应对外界胁迫这些全套开销,专门负责光合固碳。宿主细胞给它稳定的水环境、矿物、二氧化碳,把废料及时运走。相当于专职工厂,不用额外负担别的生存任务,大大提高了 单位生物量的收获能量和固碳(转化为有机物质)的效率 。
真核细胞对生命演化的另一个大的贡献带来线粒体,相当于在细胞内部装上了大量 “微型发电厂”,大幅拉高了单位细胞利用有机物质的能量密度。有了这份富余能量,才支撑得起细胞分化、细胞之间互相协作,甚至出现一部分细胞放弃繁殖、专门承担营养、运动或者防御的功能。
因此,真核生物提升了从外界 获取能量和细胞内部利用能量 的效率,是单细胞生物向多细胞生物演化的基础。
第五章 浅海底栖多细胞生物诞生
5.1 海底热液喷口和浅海的化能合成菌 和异养细菌 没有本土演化出多细胞生物
热液喷口是生命极早期的诞生摇篮,可以诞生原始单细胞生命(原核、早期原始细胞),但 地球上所有热液区的多细胞动物(如 巨型管虫、热液蛤、贻贝、铠甲虾、蟹类 ) 的祖先全部生活在有光的浅海、大陆架环境,这里的多细胞生物并不是在热液喷口内部一步步 一步步从单细胞原地演化成多细胞然后入侵过来的 。
化能合成细菌可以形成菌落、丝状体,细胞挨在一起生长,这属于简单的群体现象,细胞之间基本没有功能分化,每一个细胞大多还可以独立生存。一旦打散,各个单细胞依旧可以单独活下去;真正的多细胞生物是 有组织分工的 ,它们 演化出细胞分化、 部分细胞会专职化,失去独立生存能力。
热液喷口生活的管虫、热液贻贝、铠甲虾、阿尔文虾的祖先都来自普通深海、冷泉、鲸落、浅海,再迁移定植到热液环境,依靠化能合成菌作为物质和能量来源生存下来。他们获取化能合成菌物质能量的途径有两种:
放牧取食模式 :铠甲虾、某些端足类、部分蟹,跑到微生物席表面,直接刮食底栖化能细菌为食物。
内共生模式 :热液蛤、贻贝、巨型管虫,演化出特殊身体结构,把化能合成细菌收纳在自己体内组织,动物负责采集硫化氢、氧气、二氧化碳交给细菌,细菌制造有机物供养宿主,形成紧密共生。
这些动物的幼虫阶段,会在海水中浮游扩散,寻找新的喷口 / 冷泉点位定植。一旦旧喷口熄灭,整个群落就会消亡,等待别的地方喷口形成,再由别处飘来的幼虫重新建立群落。
热液喷口不能原地演化出多细胞的原因很多,大体可以分成三个方面。
第一, 能量供给模式的根本限制,很难支撑化能自养生物向真核、多细胞跃迁 。热液的能量是依靠硫化物氧化的化学能,全部掌握在原核微生物手里。原核生物要走向多细胞,首先要跨过真核细胞这道门槛,而真核的出现依赖一次极其罕见的线粒体内共生事件,这一事件发生在普通海洋环境,而不是热液喷口内部。热液环境中原核生物虽然繁盛,但原核受细胞膜表面积 ‑ 体积比约束,很难自主发展出大体积、高复杂度细胞;即便出现多细胞团聚体,也只能是简单的微生物席,走不出组织分化、器官形成这一步。热液可以养活大量微生物生物质,但这种能量是 “ 二手能量 ” ,要靠细菌先固定碳,没有条件支撑从零开始构建多细胞个体。现在热液里的多细胞动物,全部是拿来主义:动物身体架构已经在别处演化完成,跑到热液再绑定化能共生菌,借用细菌的产能。
原核生物通用的能量天花板是最底层的约束因素。细菌、古菌全部依靠细胞膜的呼吸链制造 ATP ,产能能力绑定膜表面积。一旦多个细胞聚合形成团块,团块内部的细胞,细胞膜无法接触外界还原性底物,产能就会严重不足。多细胞需要额外的基因:细胞黏附、细胞信号、细胞分化、凋亡调控,维持这一大套基因需要持续消耗能量。原核生物没有线粒体,单位基因的能量供给非常有限,很难支撑一整套分化调控基因组。
地球上真正意义的多细胞(细胞类型分化)几乎全部建立在 真核 ‑ 线粒体 这套内共生革新之后,这件事在地球历史上只偶然发生过一次,化能合成菌没有跨过这道门槛。
化学环境剧烈波动,有毒物质梯度变化极端 。热液流体和正常海水剧烈混合,温度、硫化氢、重金属、 pH 在厘米尺度就剧烈跳变。一会儿是几百度高温热液,几步之外就是 2℃ 深海冷水;高浓度硫化氢既是化能合成的能量来源,同时对动物细胞是剧毒物质,会抑制呼吸链。单细胞微生物可以靠细胞膜耐受、快速代谢解毒,在狭窄的混合带生存。但多细胞生物拥有大量分化细胞、循环系统、组织器官,很难在这种厘米级剧烈震荡的化学场里完成早期演化。今天生活在这里的管虫、贻贝,是演化出特化器官(营养体、特化鳃组织)、依靠共生菌来隔离毒素,这套复杂结构是已经成型的多细胞动物迁入之后才获得的适应性改造,不是在喷口里从零组装出来的。
化能合成的能量底物本身就高度局域化、梯度化。热液、冷泉的硫化氢、氢气、甲烷不是均匀遍布海水,只存在于流体和海水的交界面薄层。化能菌必须待在这个狭窄界面上,一边接触还原性流体,一边接触海水电子受体。如果聚合成为厚的多细胞躯体,外层细胞消耗完硫化物,底物根本扩散不到内层细胞,内层细胞直接饿死。对比光合作用,阳光是穿透性的,可以照射进团块内部,蓝藻丝状体、群体内部细胞依然可以接收光能固碳,这是光合原核可以发展丝状体、简单群体的客观条件;化能合成做不到这一点,底物扩散限制死死限制了躯体加厚。化能菌最优生存策略就是单细胞、薄藻席、生物膜,每个细胞尽量自己直接接触化学梯度,而不是抱团形成厚组织。
即便化能合成菌迁移进入浅海生境,这套底物约束依旧无法解除。浅海的化能合成环境大多局限于河口、红树林、海草床的沉积物表层,硫化氢、还原性物质只来自沉积物向上弥散,同样是极薄的氧化 ‑ 还原交界薄层。在浅海透光带,海水整体是氧化环境,还原性底物会被氧气快速氧化消耗,无法在水体中稳定存在。就算化能菌来到阳光充足的浅海,它们依旧只能贴附在沉积物界面生存;一旦聚集成厚细胞团,内层细胞依旧得不到足够还原底物。同时浅海有强大的光合竞争者,蓝藻、单细胞光合真核生物利用阳光的能量产出远高于化能合成,化能菌只能占据光合生物不愿落脚的微生境,无法获得足够大的种群规模与稳定生态空间,来慢慢筛选多细胞分化所需要的一系列突变。浅海环境并没有消除化能合成代谢模式自带的物理 ‑ 化学瓶颈,因此即便迁移至此,化能合成菌依旧没有演化出真正多细胞。
第二,生境本身环境扰动较大,极度不稳定, 不利于多细胞谱系长期打磨复杂性状。 生物演化缺乏长期连续演化的时间窗口 。化能合成生态系统是碎片化的孤岛,各个喷口之间被广袤贫瘠深海隔开。典型黑烟囱热液喷口,单个喷口的活跃寿命往往只有几十年到数百年,火山活动、洋壳喷发可以直接把整个喷口群落彻底抹除。热液喷口是不断毁灭 ‑ 重建的碎片化孤岛,局部环境反复重置,很难提供一套连续不变的演化舞台。喷口可以保存微生物,微生物繁殖快、扩散强,灭绝之后可以快速重新定植;但多细胞复杂化是慢过程,扛不住这种高频的生境毁灭。多细胞起源,尤其是真核细胞、多细胞组织分化,需要几百万、上千万年尺度的稳定环境,允许基因组慢慢积累突变、细胞之间建立协作分工。但热液环境频繁局部灭绝,种群反复重建,更利于快速繁殖的单细胞,不利于需要漫长世代筛选的复杂躯体演化。
即便转移到浅海,适合化能菌的生境依旧是斑块化、碎片化的,并不具备连续广阔的生存空间。
第三,演化选择压力的差异。多细胞出现,通常有两类强选择驱动:抵御捕食、提高资源捕获效率。在浅海透光带,单细胞浮游生物会被原生动物捕食,抱团、分化有利于降低被捕食压力,推动多细胞反复试错演化。而原始热液生态系统长期缺少捕食者压力,不存在 “ 被吃 ” 这个强大筛选因子。同时,化能菌靠化学反应固碳,单细胞效率已经很高,抱团并不会显著提升固碳收益,反而带来底物供给的麻烦,多细胞没有明显的适合度优势。即便来到浅海,化能合成细菌只是微生境里的次要类群,捕食压力主要作用于光合浮游生物,并没有给化能菌施加足够的、推动多细胞化的选择压力。
综合来看,不是化能合成菌不想走向多细胞,而是这套代谢模式加上原核细胞的能量架构,天然存在很高的演化壁垒。哪怕 40 亿年时间,也始终停留在单细胞与简单群体层面。
复杂多细胞的舞台,最终转移到了拥有线粒体的真核生命,并且优先发生在能量供给更加稳定广阔的光合生态系统。即便化能合成菌扩散进入浅海各类还原性微生境,上述物理、能量、生态约束依旧生效,始终没有跨过真正多细胞分化这道演化门槛。
5.2 浅海底栖真核单细胞异养生物演化为多细胞异养生物
冥古宙末期至元古宙早期,热液起源的原始单细胞异养生物逐步扩散到大陆架浅海海底,定居在沉积物 ‑ 岩石界面,形成底栖的异养单细胞群落,并逐渐演化出真核单细胞异养生物。
浅海底栖真核单细胞异养生物以集群生存为主要生活方式。大量细胞聚集贴在基底表面, 细胞之间不再完成分裂之后就彻底分开,子代细胞和母细胞保持连接,这是走向多细胞化最关键的初始一步 。这并不是立刻演化出复杂器官,仅仅是细胞集群:遗传物质各自独立,还没有严格的分化,只是一群黏连在一起的单细胞集合体,依靠集体捕获颗粒有机质,抵御水流扰动,降低被水流冲走的风险。底栖生境给这种聚集模式提供了条件;如果是浮游状态,细胞集群很容易被水流撕碎打散,很难稳定存续。
值得注意的是,目前化石与分子钟证据并不能锁定多细胞化唯一发生在浅海底栖异养环境,仍然存在其他竞争性假说,但浅海底栖异养集群路径,可以很好地解释早期动物总界多细胞生物的生存逻辑:底栖环境利于细胞粘连聚集,有机颗粒充足支撑异养代谢,环境相对稳定允许漫长的功能分化试验,而动荡的大洋水体很难完成这套早期试验。
在浅海底栖环境持续的选择压力下,集群内部慢慢出现最简单的功能分化。一部分细胞继续负责摄食、营养代谢,另一部分细胞专门承担繁殖功能,体细胞与生殖细胞初步分野,真正意义上的多细胞个体就此出现。整个过程并不存在某个突如其来的 “ 飞跃 ” ,是从松散细胞聚集体,到不完全分离的细胞群,再到有分工的多细胞有机体的连续过渡。
底栖多细胞异养生物成型之后,又出现两条后续演化分支。一部分继续固守底栖,发展出各类底栖动物;另一部分个体或者生殖幼体挣脱基底束缚,进入水体,演化出浮游生活的多细胞类型,也就是早期浮游动物。 因此底栖生境是多细胞化的重要摇篮,水体浮游很多时候是次生获得的生活方式,而不是生命一开始就拥有的生存模式。
这一支是 异养底栖起源 的多细胞谱系,代表动物总界的早期演化路径,它们并不掌握光合作用。 同期浅海还存在另一套演化方向:底栖单细胞自养生物,同样可以通过集群走向多细胞,演化出多细胞藻类。 二者生境同样是浅海底栖,但代谢起点完全不一样,一个依靠摄取外界有机质,一个依靠光能固碳。
5.3 浅海底栖真核单细胞自养生物演化为多细胞自养生物
在浅海透光带的底栖环境中,单细胞自养生物聚集形成藻席,这是走向多细胞结构最重要的摇篮。这里光照稳定、基质可以附着,细胞之间紧密挨在一起,不是简单堆凑,慢慢出现了细胞之间的物质交换、信号沟通,为多细胞化提供了环境基础。
冥古宙晚期到元古宙早期,已经出现大量底栖的光合单细胞,它们附着在海底矿物表面,不断分裂之后子代细胞不彻底分开,形成丝状体、片状的群体形态。一开始还只是群体,每个细胞都可以独立生存,没有真正的分工;这是多细胞化的前奏,和真正意义上多细胞生物还有一道鸿沟。
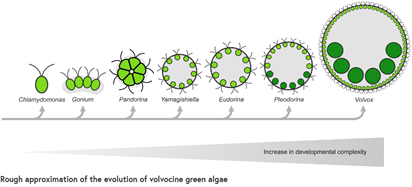
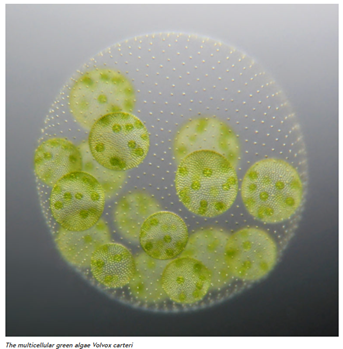
生存压力推动进一步演化:底栖环境里,处在群体外层的细胞接收光照充分,但是容易受到紫外线、捕食、机械搅动伤害;内层细胞光照不足,但环境相对安稳。长期的环境筛选之下,开始出现功能分化,一部分细胞专门负责光合作用,另一部分负责附着、支撑、繁殖,细胞丧失独立存活能力,真正的多细胞个体就此诞生。
底栖的生活方式极大促进了这个转变。如果是浮游单细胞,分裂之后子代很容易被水流冲散,很难维持稳定的细胞集合;而底栖固着,把细胞物理约束在局部空间,让细胞持续接触,才有机会发展细胞通讯与分化。所以 多细胞光合生物首先出现在浅海底栖,而不是大洋水体当中 。
早期多细胞藻类依旧牢牢依附海底,整体是底栖生活。后续一部分类群发生形态改变,摆脱基底束缚,细胞团可以悬浮在水里,由此才进入浮游生态位,演化出浮游型多细胞藻类。也就是说,多细胞光合生物,也是先底栖,后浮游,延续了这套演化模式。
多细胞体型偏大,沉降速度更快,如果没有气囊、胶质结构辅助浮力,很容易沉到真光层之下死亡。所以 绝大多数多细胞光合藻类演化选择底栖固着,附着在海底基质 ,只把光合部分伸向光照水体;只有少数类群演化出浮力调控结构,才得以长期浮游生存。马尾藻是真正意义上的多细胞,有组织分化,有气囊、叶状体等结构,细胞功能出现分工 (参见下一篇的 7.5 ) 。
需要注意的是,多细胞化在地球历史上是多次独立发生的事件,自养藻类、异养动物、真菌各自走了自己的路径,浅海底栖环境是其中多次多细胞革新共同的优选场景。对于光合类群,浅海底栖单细胞自养生物,就是多细胞藻类最可能的祖先类型。
第六章 浅海底栖异养生物(返祖)扩散到深海底栖
6.1 浅海底栖异养细菌进入深海底栖生境
大陆架浅海底栖沉积物是细菌多样性极高的库源,大量底栖细菌可以向大陆坡、深海平原的底栖生境拓殖。和浮游细菌依靠海洋雪颗粒沉降不一样,底栖细菌的扩散条件更加特殊:它们本身生活在沉积物颗粒内部或颗粒表面,要离开浅海陆架,抵达数千米水深的深海海底,主要依靠沉积物输运过程,而不是自由浮游。
主要扩散途径有三类。第一类是重力流、浊流。大陆架边缘发生滑坡、浊流事件,整块浅海沉积物连同里面全套底栖微生物,被高密度泥沙流顺着大陆坡向下搬运,一次性输送到深海平原。这是大规模批量转运浅海底栖细菌最重要的方式,一次浊流可以把巨量浅海沉积物与微生物直接铺到深海海底。第二类是再悬浮 ‑ 沉降,波浪、底流扰动陆架表层沉积物,把底栖细菌裹挟进悬浮颗粒,之后跨陆坡缓慢沉降,输送到更深的海底。第三类是动物介导,底栖动物的迁移、粪便颗粒,也会携带附着的底栖细菌向下输运,但通量远小于浊流与沉积物再悬浮。
大量被搬运过去的浅海底栖细菌属于 “ 暂时性迁入者 ” 。虽然物理上到达了深海底栖环境,但面临高压、低温、有机质极度匮乏的筛选。浅海陆架沉积物有机质输入充足,营养丰富;而深海沉积物有机碳供给非常微薄,依靠上层沉降的海洋雪,碳通量只有浅海的很小一部分。很多浅海底栖细菌来到深海之后,不能完成持续分裂,只能休眠、缓慢衰亡,无法建立稳定的本土种群,仅仅保存在沉积物死细胞或者休眠孢子库当中。
只有部分谱系完成适应性演化,真正定居深海底栖。演化上的核心变化,以 基因组精简、寡营养代谢强化、耐压与低温蛋白修饰、休眠机制强化 为主。浅海底栖细菌拥有丰富多样的底物代谢通路,用来应对陆架多变有机质输入;进入深海寡营养底栖环境,很多响应高营养的调控基因逐步丢失;同时强化低浓度有机质捕获系统,发展长时间休眠的能力,用来应对有机质脉冲式输入。高压环境会损伤蛋白质结构,需要蛋白序列发生特化修饰,这是浅海祖先必须获得的关键性状。
这里存在两条演化路径。第一条:浅海底栖细菌,经由浊流、沉积物再悬浮直接搬运至深海底栖,就地适应深海沉积物环境,直接演化成深海底栖本土细菌。这是最直接的拓殖路径。 第二条:浅海底栖细菌先被搬运到深海沉积物定居,之后一部分类群离开沉积物颗粒,二次进入上覆深海水体,演化为深海浮游异养细菌。这和动物 “ 底栖先行,再进入水体 ” 的演化模式完全一致,微生物层面也重复这套逻辑。
需要厘清和热液喷口微生物的区别。普通深海平原、深海沉积物的异养底栖细菌,很多是浅海底栖细菌向下拓殖的后代;但热液喷口的化能自养细菌,属于古老本土谱系,并不是浅海底栖细菌演化而来。深海底栖生境本身是拼接而成:一部分是远古留存的热液 ‑ 化能谱系,另一大部分是不断从浅海向下迁入、驯化成功的异养底栖细菌。
同时也存在反向扩散:已经适应深海的底栖细菌,也可以通过浊流回流、沉积物再悬浮回到陆架浅海,但是在浅海营养充足、竞争激烈的底栖环境,很难成为优势种群,大多局限在局部微生境。
6.2 细菌扩散到深部生物圈
深部生物圈不能自发产生生命;它可以接纳来自表层或者远古遗留的微生物,在地下隔离环境中演化出新类群,但不会从无机物重新创造生命。
深部生物圈是地表微生物迁入、隔离、筛选、演化的结果,是地球隐藏的地下生命王国,并非无机物自发诞生生命的场所,为人类重新认知地球生命的生存边界与演化规律提供了颠覆性的科学依据。
深部生物圈只发生已有微生物种群隔离、筛选、演化;深部岩层不会从无机物自发诞生全新生命。
6.2.1 海洋沉积岩深部生物圈
微生物丰度一般从海底表层 10 ⁹ cells/cm³ ,随埋深指数下降,在几百米到上千米深度仍可检出;营养以埋藏有机质为主,微生物祖先来自表层海洋。
海洋沉积岩深部微生物有独特的起源与生存模式 :它们的祖先全部来自大洋表层微生物,随海洋生物碎屑、有机颗粒物持续沉降,被新的沉积物层层掩埋。随着埋深增加、氧气耗尽、有机质持续消耗, 环境逐步变为无氧、能量极度匮乏, 绝大多数微生物消亡,极少数耐极端寡营养、低代谢的类群留存下来。在数百万年至千万年的封闭隔离环境中,逐步演化出适配沉积岩深部环境的特有菌群 (比如 Bathyarchaeia 、 Atribacteria 、绿弯菌等),它们 祖先来自表层 ,但现代种群和表层近亲差异巨大,代谢方式改造,世代极长,很多几乎不增殖,处于休眠、极缓慢代谢状态。这就是你刚才说的路径:表层起源 → 埋藏隔绝 → 定向演化。
沉积物深部同时保留异养细菌以及化能合成菌,但是没有全球统一的异养与化能合成菌固定比例。总体趋势是随埋藏深度增加,有机碳耗竭,异养微生物的绝对数量显著下降,化能合成菌在群落中的相对占比随之升高,但两个类群各自的总生物量都是持续走低;断层、俯冲带等有还原性流体补给的区域,化能合成类群占比会进一步提升;大量深部微生物属于混合营养,不能简单划分为非此即彼的两类
6.2.2 大陆结晶岩深部(如南非金矿)
微生物丰度很低,化能自养,不依赖表层有机质,封闭亿年的裂隙水环境。 这些陆地深部微生物,完全不依赖任何表层有机质输入 。它们依托岩石水岩化学反应产生的氢气、硫化物获取化学能,在高温、高压、寡营养、绝对黑暗的封闭岩层中长期存活。更重要的是,基因测序证明,这类地下菌群与地表微生物亲缘关系极远,是长期地下隔离演化形成的独特类群,绝非地表污染带入。
现代水文连通带来的向下输送 地表土壤、浅层含水层的微生物,顺着大气降水形成的地下水,沿着岩石裂隙、断裂带向下运移。裂隙网络只要具备透水通道,微生物就可以随水流被带到地下几百至数千米深度。进入深部之后,环境完全黑暗,没有光合有机质输入,只有水 ‑ 岩反应产出氢气、硫化物,筛选出化能自养类群,慢慢形成地下群落。很多钻孔基因测序显示,深部微生物和地表浅层类群存在亲缘关联,证明迁移输入这个路径真实存在 . 。
地质历史时期古地下水的封存带入 地质历史上的降水、古河流、古热泉,把当时地表微生物带入地下,之后岩层裂隙被黏土、矿物充填封闭,流体不再和地表交换,微生物就被封存在岩石裂隙流体包裹体中,长期隔离生存。南非金矿 2.8 千米深处 Desulforudis audaxviator ,就是典型案例,环境已经和地表隔绝数百万年,它的祖先来自过去地表输入,之后在地下独立演化,形成几乎单一物种的生态系统。
微生物进到深部之后,营养极度匮乏、代谢速率极慢,世代周期可达数百年甚至上千年。经过长期隔离,会发生基因丢失、适应性突变,分化出和地表近亲不一样的生态类型,但 祖先源头依旧是地表生物圈 ,不是地下无中生有产生的新生命。
特殊情况:断裂新开启带来新输入 古老封闭岩层,如果发生构造活动,新裂隙打开,深部会再次接通浅层地下水,地表微生物又可以新一轮灌入,替换或者补充原有地下微生物群落,因此同一块岩体,不同裂隙的微生物来源,有可能是多期次输入叠加的结果
化能合成(化能自养)微生物是陆地深部生物圈的核心类群,在大陆结晶岩、花岗岩、玄武岩深部含水层里占主导地位。地下几千米深度完全无光,没有光合作用,没有地表输入的有机碳,生物只能依靠水 ‑ 岩反应产出的无机底物获取能量:氢气 H₂ 、硫化氢 H₂S 、亚铁、氨等,利用这些无机物的化学能固定二氧化碳合成有机物。
地表、浅地热温泉里面本来就存在一大批会做化能合成的细菌、古菌。降水顺着裂隙往下渗,把这类微生物带到地下几百 ‑ 几千米。刚下去的时候,它们不一定占优势;进入无光、没有有机碳的深部环境之后,只有会利用氢气、硫化物化能自养的类群才能活下来,其他微生物被淘汰。
南非金矿那株 Desulforudis audaxviator ,完全靠放射性产氢化能自养,裂隙水已经和地表隔绝几百万年,但基因组证据显示,它的祖先还是过去地表随古地下水渗透下去的,之后在地下封闭环境长期独立突变演化,变成地下特有的菌株,不是地下原地生成的生命。瑞典花岗岩钻孔、大陆玄武岩含水层的产甲烷古菌、氢氧化细菌,全是这套逻辑
6.2.3 洋壳玄武岩深部
洋壳玄武岩深部微生物的丰度最低,依靠水岩化学反应持续供能。它们的起源最特殊:既不同于陆地深部古老岩栖微生物,也不同于沉积岩埋藏型表层溯源微生物。洋壳玄武岩深部微生物 双源共存 :一部分是海水渗透带入的表层微生物拓殖演化而来,另一部分是地球早期热液生命遗留的古老本土支系,是深部生物圈中演化历史最古老、独立性最强的类群。这部分学界还存在争议,没有完全定论。
6.2.4 陆地深层 生物圈会随地下水网进入 海洋深部生物圈吗
这个问题的答案要分两层来看,不能简单说 " 能 " 或 " 不能 " 。
浅层的陆地含水层确实和海洋连通。沿海地区的地下水会通过海底地下水排放( SGD )源源不断地渗进海里,水里带着的微生物自然也跟着过去。西班牙 Mar Menor 泻湖的研究就用镭同位素追踪到,地下水里的微生物确实被 SGD 输送到了近海环境,对海岸带的微生物群落有实实在在的影响。但这条路主要影响的是近海海底和海水,够不到真正的 " 海洋深部生物圈 "—— 也就是洋壳玄武岩裂隙、几千米厚的海洋沉积物深处那个黑暗世界。
真正的难点在深部。大陆地壳深处几千米的裂隙水,和大洋地壳深部的含水层,中间隔着大陆边缘的过渡带,深部流体运移极慢,往往一米就要走几百上千年,微生物在这么长的旅途中能不能存活都是问题。所以不存在一条现代活跃的 " 地下水高速路 " 直接把陆地深部微生物送到海洋深部。
但两者并非完全隔绝,地质过程提供了几条间接通道。最典型的是被动大陆边缘,大陆架的基岩含水层可以延伸到海底之下,和洋壳含水层在深部发生接触。瑞典 Äspö 硬岩实验室就是个活例子——那里的深部裂隙水直接和波罗的海连通,海水顺着断裂下渗到几百米深的结晶岩里,停留几年到二十年,形成所谓 " 现代海洋地下水 " ,里面的微生物既有海洋来源也有陆地土壤来源。这说明在海岸带,海陆深部的水力连通是真实存在的,只是方向更多是海水灌进陆地,而不是陆地深部水大规模涌入海洋。
俯冲带是另一条更壮观的通道。大洋板块俯冲到大陆板块之下时,把整个洋壳连同里面的海水、海洋微生物一起拖进地球内部;反过来,俯冲产生的深部流体又会沿着断裂上升,把深部的微生物带上来。日本南海海槽的研究就发现,泥火山和冷泉的深部流体活动能刺激深部生物圈的甲烷产生,形成一个 " 深部——浅部 " 互联的生态系统。
最有说服力的证据来自基因组比对。科学家在 Juan de Fuca 海岭侧翼的洋壳玄武岩流体里重建了一个叫 "Candidatus Desulfopertinax cowenii" 的基因组,发现它和南非金矿 2.8 千米深处的 "Candidatus Desulforudis audaxviator" 构成单系群——两者都是嗜热、靠氢气和硫酸盐生活的化能自养菌,基因组成高度相似。一个在太平洋洋壳深处,一个在非洲大陆金矿深处,相隔半个地球却属于同一谱系。这说明这个类群的祖先曾经在某个地质时期通过某种深部通道扩散过,之后在海陆两个环境里各自独立演化。
所以准确的说法是:陆地深部生物圈不会像地表水入河、入海那样,顺着现代地下水网直接流进海洋深部;但在地质时间尺度上,通过大陆边缘的深部含水层接触、俯冲带的流体循环、深大断裂的间歇性连通,两个深部生物圈之间确实存在过微生物的交流和谱系共享。它们更像是两个被漫长地质过程偶尔打通的地下洞穴,而不是一条常年通水的管道。
海底沉积物下面的深部生物圈 的微生物的 " 种子 " 大体上是从上面掉下来的。海洋表层那些浮游细菌,很多会附着在死亡浮游生物、粪便颗粒组成的 " 海洋雪 " 上,一路沉到海底。这些颗粒堆积成沉积物,细菌也就跟着被一层层埋下去。 洋壳玄武岩里的深部生物圈 的微生物更可能是随海水一起渗进去的,包括底栖和浮游细菌。
深部生物圈并不是一个完全封闭的 " 孤岛 " 。 2022 年《科学 ・ 进展》上的研究揭示了一个 " 微生物扩散循环 "—— 深部含油气沉积物里的嗜热细菌会形成芽孢,顺着地质流体的通道向上迁移到冰冷的海床,这些活芽孢又会被新的沉积物重新埋回地下,在合适的地方再次萌发。所以深部和表层之间其实存在双向的人员往来。
6.3 多细胞底栖异养生物从浅海底栖扩散到深海底栖
多细胞底栖后生动物在浅海起源后,寒武 ‑ 奥陶纪的海洋底栖世界几乎全部集中在透光的大陆架。深海(大陆坡以深)早期基本不存在复杂多细胞底栖动物群落,广阔的深海海底长期以微生物主导。后来大量多细胞底栖类群逐步从浅海出发,向深海底栖生境扩散拓殖,这是深海动物区系形成最重要的来源。
扩散的物理载体与迁移模式,和微生物不一样。微生物可以随颗粒被动沉降;但多细胞底栖成体固着或者匍匐生活,无法长距离迁移, 拓殖深海几乎全部依靠浮游幼体 。成体依旧生活在浅海陆架,繁殖释放浮游幼体,幼体随海流向下、向外输送。一部分幼体在大陆架就沉降变态;另有一部分幼体被海流带到大陆坡、深海平原,如果可以耐受低温、高压、食物匮乏,就可以在深海底质上附着,建立新的深海底栖种群。幼体阶段就成为浅海 ‑ 深海之间基因交流、物种拓殖的唯一桥梁。
但并不是所有浅海底栖类群都能成功扎根深海,存在很强的环境筛选。深海底栖面临三重核心压力:持续低温、静水高压、食物极度匮乏。深海没有初级生产,全部有机质依靠上层海洋沉降的海洋雪,食物通量只有浅海的几十分之一甚至百分之一。
成功拓殖深海的多细胞底栖生物会发生一系列适应性改变。代谢速率普遍下调,生长变慢、寿命拉长;繁殖策略改变,很多类群放弃大量小型浮游幼体,改为产出数量少、卵黄丰富的大卵,减少幼体在漫长输送途中死亡;身体结构上细胞膜、蛋白结构改造以适应高压;摄食结构特化,有的强化腐食、有的发展沉积取食,利用沉积物里稀少的有机碎屑。
拓殖过程存在两条主要演化路径。
第一条路径: 浅海陆架底栖 → 沿着大陆坡逐步向下梯度扩张 。物种沿着坡度缓慢拓展深度分布范围,种群连续过渡,浅海种群和较深的种群之间还能通过幼体交换保持基因交流。这是最常见的模式,很多海绵、海葵、多毛类、双壳、海胆都是这样逐步下潜,分布深度一点点加大,慢慢进入上斜坡、下斜坡,最后抵达深海平原。这条路径下,浅海与深海近缘类群有时还保留一定基因连通。
第二条路径: 浅海底栖生物,幼体远距离输送,跳跃式拓殖深海孤岛生境 。典型就是热液喷口、冷泉。热液、冷泉在深海是彼此隔离的 “ 生态孤岛 ” ,和大陆坡底栖并不连续。浅海起源的底栖动物,依靠寿命较长的浮游幼体,跨越上百公里寡营养深海水体,降落到喷口 ‑ 冷泉点位定居,之后再演化出和化能细菌共生的性状。巨型管虫、热液贻贝、热液蛤的祖先,全部都是普通浅海双壳、多毛类底栖动物,并不是在热液原地演化出来。
这里需要做一个关键区分:热液喷口本身是生命最早的摇篮,但 复杂多细胞底栖动物并不是在热液起源 。热液的多细胞动物群落,是浅海已经演化成型的多细胞底栖类群,二次入侵回到深海热液环境。生命进化过程中,虽然最早的单细胞生命诞生于热液;但复杂多细胞底栖动物,诞生于浅海,之后再扩散重返深海。
拓殖之后还会发生二次演化:已经在深海底栖站稳脚跟的类群,一部分继续保持底栖生活;还有一部分,如同我们前面讨论过的,从深海底栖再度入侵水体,演化成为深海水体游泳、浮游类型的动物。这和微生物演化链条形成对应:底栖是中转站,既可以接收来自浅海的迁入者,又可以输出类群进入水体。
同时也存在反向迁移:少数深海起源的底栖物种,幼体借助海流回到大陆架浅海,但这种反向拓殖属于小概率事件。浅海竞争激烈,捕食压力大,经过深海驯化的物种大多竞争力不足,很难在浅海成为优势类群,只能占据局部特殊微环境。
浅海光合生态系统繁荣之后,催生大量多细胞底栖生物;借助浮游幼体的输送,这些类群一步步向下占领大陆坡与深海平原,又跳跃占领热液冷泉孤岛;深海底栖作为演化中转站,再向深海水体输出新的生命类型,完整构建起整个深海动物世界。
转载本文请联系原作者获取授权,同时请注明本文来自张武昌科学网博客。 链接地址: https://blog.sciencenet.cn/blog-39359-1555877.html
上一篇: “生命充满海洋”的历程 欢迎参加科学网十佳博文评选活动! 主办单位:  支持单位: