
他们用“高清标尺”揭示香蕉千万年“族谱”
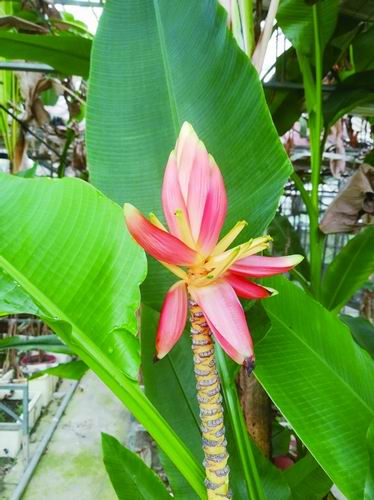 观赏蕉Musa exotica的苞片艳丽多彩。
■本报记者 朱汉斌
香蕉是热带与亚热带地区最具经济价值的水果之一,也是全球超4亿人口的重要食物来源。但鲜为人知的是,超市货架上超半数香蕉均来自同一无性繁殖品种——“卡文迪什”。该品种依赖营养繁殖,每一株都是母体的复制品,遗传基础高度一致,多样性极为匮乏。
这个庞大的“克隆军团”一旦遭遇香蕉枯萎病热带4号生理小种(Foc-TR4)等毁灭性病害,就可能面临灭顶之灾。这种被称为“香蕉癌症”的土传真菌,可在土壤中存活数十年,目前正从东南亚向全球香蕉主产区蔓延,而卡文迪什对其几乎不具备抵抗力。
如何破局?答案可能藏在香蕉的野生“亲戚”里。芭蕉科现存约80个物种,蕴藏着抗病、抗逆等宝贵遗传资源。但这些野生近缘种的演化关系是什么?染色体结构变化与苞片颜色多样化之间是否有关联?这些问题一直缺乏基因组层面的直接证据。
中国科学院华南植物园副研究员王新风、黄慧润团队联合四川大学副研究员孙朋川等科研人员,首次重建了芭蕉科的祖先核型,从染色体层面系统揭示了该类群的演化轨迹,并发现染色体结构变异与苞片颜色表型分化之间存在密切关联。近日,相关研究成果发表于《当代生物学》。
一本“无缺页”的基因天书
这项研究的基石是一项基因组学的前沿技术——端粒到端粒(T2T)基因组组装。
“如果将基因组比作一本记录生命全部遗传指令的百科全书,那么过去的技术如同老式扫描仪,总会在染色体末端(端粒)和复杂重复区域留下模糊甚至空白的页面。”论文共同通讯作者王新风告诉《中国科学报》,而T2T基因组组装实现了从头到尾的完整读取,没有任何缺失。
研究团队选取了一个关键物种——Musa exotica,这是一种早期分化的野生观赏蕉,分布在我国广西南部及越南北部。团队完成了它的T2T基因组组装,基因组组装质量指标contig N50达到47.41Mb。这一指标意味着基因组片段高度连续、完整,好比以往只能拼接出几米长的碎片,如今拼出了几十公里长的连续路段,整座“基因长城”的每一处都清晰可辨。
“高质量T2T基因组是本次研究的重要基础。”论文共同通讯作者黄慧润告诉《中国科学报》,该基因组为芭蕉科不同物种之间的染色体结构比较提供了可靠参考,也支撑了后续祖先核型重建和系统比较分析。
有了这把“高清标尺”,团队着手进行更具挑战性的工作——重建整个芭蕉科的祖先核型。
一部染色体的“缩编史”
“挖掘和利用香蕉野生近缘种的优异遗传资源,是拓展香蕉遗传基础、推动品种改良的重要途径。”论文共同第一作者、中国科学院华南植物园已毕业博士生付宁表示,要充分利用这些资源,首先需要厘清芭蕉科的染色体“族谱”——祖先的染色体是什么样,又经历了怎样的演化。
核型是一个物种染色体组的完整“合影”,其数量、大小、形态一目了然。祖先核型则相当于所有现代物种共同祖先的染色体“全家福”。
芭蕉科现存物种的染色体数目差异显著:有的含11对,有的含10对,有的仅含9对。这些数字差异是随机演变,还是遵循某种演化规律呢?
研究团队通过比较M· exotica与多个已有基因组的精细结构,像拼合一幅巨型演化拼图一样,逐步还原出芭蕉科祖先的面貌。令人意外的是,芭蕉科祖先的单倍体染色体数应为n=17。也就是说,今天所有染色体数目各异的芭蕉科物种,均源自同一个拥有17对染色体的共同祖先。
从17到11、10、9,这一过程是如何发生的?研究发现,这条“缩编”路径并非一次性骤减,而是经多种染色体重排事件有序推进:端到端连接(两条染色体末端融合)、嵌套染色体融合(一条染色体整体插入另一条内部)和相互易位(染色体片段交换)等。这些事件不断重塑染色体结构,使不同演化支系的染色体数目逐步减少。
值得关注的是,这一基于染色体结构推演的演化路径,与基于DNA序列构建的分子系统发育关系高度一致。两种独立证据指向同一棵“家族树”,为芭蕉科各类群间的演化关系提供了可靠的细胞生物学证据。
“祖先核型为比较不同物种的染色体结构、推断演化轨迹提供了客观依据,也让我们看清了野生近缘种所保留的遗传信息及其利用价值。”论文共同第一作者孙朋川表示。
染色体“拆迁”与苞片颜色“装修”
染色体数目演化的谜底揭开后,团队开始进一步追问:染色体重排是否影响了苞片颜色的多样性?
芭蕉科植物苞片色彩丰富多样,涵盖鲜红、橙红、粉红等颜色,性状差异显著。M· exotica本身即以亮(橙)红色苞片著称。这些颜色差异不仅关乎观赏价值,也是分类和育种的重要依据。
研究团队发现,染色体“断裂-融合”的边界区域显著富集花青素生物合成相关基因。花青素是赋予苞片红、紫、蓝色泽的天然色素。在这些“断裂热点”上,不仅分布着查尔酮合成酶(CHS)、黄烷酮3-羟化酶(F3H)等结构基因,还聚集了MYB、bHLH等转录调控因子。
团队通过对不同颜色花苞的转录组比较分析,发现花青素合成通路中CHS、CHI、F3′5′H、ANS等关键基因的表达差异,主要源于转录调控水平的强弱,而非基因拷贝数的多寡。也就是说,不同颜色苞片的差异不在于“生产工厂”的数量,而在于“调度员”下达指令的强度。
染色体“车厢重组”恰好重新排布了“调度员”与“工厂”的相对位置——有些被搬到了新“街区”,有些换了“邻居”。这种基因“居住环境”的改变,可能重塑了整个调控网络,为苞片颜色的表型分化奠定了遗传基础。
黄慧润指出,该研究揭示了染色体结构变异与苞片颜色表型分化之间的联系,为理解观赏蕉花部性状的遗传基础提供了新视角,也为利用基因组信息开展性状改良提供了新线索。
从“祖先密码”走向“育种密码”
“这项基础研究的意义不止于厘清香蕉的家族历史,更为育种应用开辟了实实在在的路径。”王新风对《中国科学报》说。
首先,它为全球香蕉抗病育种提供了一张“导航图”。有了祖先核型作为参照,科学家可以精准比较各野生种与卡文迪什之间的染色体结构差异,为进一步挖掘抗Foc-TR4等病害的优异遗传资源提供线索,也为后续杂交育种或基因编辑指明方向。
其次,它为观赏蕉分子育种打开了新窗口。苞片颜色是观赏蕉的核心商业性状,理解染色体结构变化如何影响花色调控网络,生物学家便能更有针对性地开展性状改良。
最后,从演化生物学视角看,它提供了一个系统的案例——植物如何通过染色体的断裂、融合与重排,在数千万年间“化繁为简”,从17对逐步缩减至9对,同时衍生出丰富多样的表型。这是自然选择在基因组尺度上的精妙雕琢。
从解锁芭蕉科的“祖先密码”,到挖掘野生近缘种的“育种密码”,这些研究不仅为理解芭蕉科基因组演化历史与重要性状形成机制提供了全新视角,也为野生资源的保护利用与香蕉遗传改良开辟了新路径。
相关论文信息:
https://doi.org/10.1016/j.cub.2026.07.071