
科学网—细胞死亡之芭蕾舞《科学》
 精选
已有 178 次阅读
2026-10-24 09:08
| 系统分类: 海外观察
两幕细胞死亡芭蕾《科学》
复杂多细胞生物因衰老、感染、损伤等多种原因,需要持续更新细胞。在很多情况下,细胞受到应激刺激后,会通过一种受调控的程序性死亡过程——凋亡发生死亡(1)。凋亡的一条关键通路涉及两种同源蛋白:Bcl-2相关X蛋白(BAX)与Bcl-2同源拮抗杀伤蛋白(BAK),二者可在线粒体上形成孔道(2,3)。这会使细胞色素c释放到胞质,启动半胱天冬蛋白酶(caspase)激活,进而执行凋亡程序(4)。BAX‑BAK孔道还可延迟线粒体DNA(mtDNA)释放至胞质,并诱导Ⅰ型干扰素(IFN)生成,这是经典的抗病毒免疫应答(5,6)。在本期第401页,杨等人(7)报道了两种截然不同的BAX‑BAK复合物:一种介导细胞色素c释放,引发免疫沉默、caspase依赖型凋亡;另一种促进mtDNA释放,介导不依赖caspase的细胞死亡并诱导干扰素产生,激发炎症反应。
凋亡的核心目标是精准清除组织中的细胞,尽可能减少对邻近细胞的附带损伤,同时避免炎症发生(1,8)。 吞噬细胞可在细胞膜完整性丧失前快速识别并吞噬凋亡细胞,很大程度上实现这一点,从而防止濒死细胞释放促炎分子(1,9)。正因如此,凋亡通常呈免疫沉默状态。caspase还可使多个免疫关键蛋白失活,进一步维持该特性,包括环鸟苷酸‑腺苷酸合成酶(cGAS)、干扰素调节因子3(IRF3)、白介素‑33(IL‑33)等(1,10)。因此,若凋亡相关caspase活性被药物或病原体编码的caspase抑制剂抑制,原本免疫沉默的细胞死亡就会转为促炎型细胞死亡(1,5,6,8)。
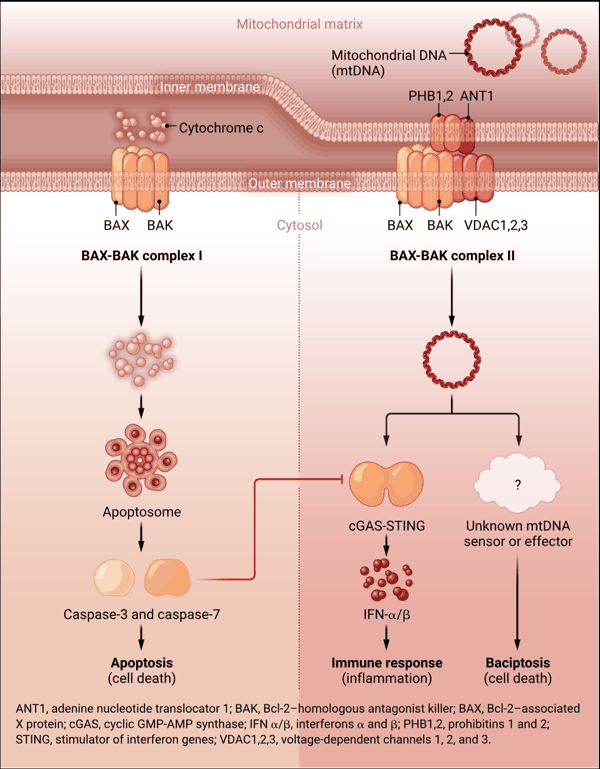
线粒体中的双重功能
细胞遭受应激时,会组装不同的BAX‑BAK复合物,释放不同信号分子,启动不同细胞死亡通路:复合物Ⅰ呈免疫沉默;复合物Ⅱ则激活强烈免疫应答。
配图:A. FISHER /《Science》
DNA损伤、蛋白错误折叠、病毒感染等多种细胞应激均可激活BAX与BAK,促使线粒体释放细胞色素c,并形成凋亡蛋白酶激活因子1(APAF1)‑caspase‑9凋亡小体;该蛋白复合物可下游激活执行型caspase‑3与caspase‑7(4)。随后caspase水解上百种蛋白,细胞发生可控性拆解,呈现经典凋亡表型(1,11)。BAX‑BAK介导的线粒体通透化对细胞命运至关重要,该过程的精细机制已被广泛研究(2,3,12–14)。目前公认:细胞应激激活一个或多个仅含BH3结构域蛋白(Bcl‑2同源结构域3蛋白)后,动员BAX和/或BAK,使其在线粒体外膜逐步寡聚化,形成允许细胞色素c外流的孔道。BAX‑BAK孔道后续可融合形成大孔,有研究认为这类大孔介导mtDNA释放,但具体机制一直存在争议(12–14)。BAX‑BAK依赖的mtDNA释放意义重大:它能够激活cGAS‑干扰素基因刺激因子(STING)通路,诱导抗病毒干扰素合成;但该通路通常会被caspase对cGAS、IRF3的水解作用所抑制(10)。而在缺失APAF1或caspase活性被抑制的细胞中,mtDNA驱动的干扰素合成通路就会被解锁(5,6)。
以往研究认为,凋亡伴随的mtDNA释放机制为:BAX‑BAK大孔使线粒体内膜向外膜膨出、疝出,最终内膜破裂,mtDNA经由疝出结构释放(12,13)。但杨等人的研究证据表明,线粒体内可形成两种独立的BAX‑BAK复合物:复合物Ⅰ分子量较低(约160 kDa),负责介导细胞色素c释放;复合物Ⅱ分子量较高(约600 kDa),组分包含BAX、BAK、电压依赖性阴离子通道蛋白1~3(VDAC1、VDAC2、VDAC3)、腺嘌呤核苷酸转运体1(ANT1)、阻抑素1/2(PHB1、PHB2),是mtDNA释放、激活cGAS‑STING通路所必需。出人意料的是,该研究提示:当凋亡小体介导的caspase激活被阻断时,细胞发生死亡(作者命名为baciptosis)依赖复合物Ⅱ(见图)。
杨等人证实,复合物Ⅱ缺陷(缺失VDAC1、VDAC2或PHB2)的哺乳动物细胞,仍然可以释放细胞色素c、发生BAX‑BAK依赖的线粒体膜疝,但mtDNA释放与干扰素生成显著减弱。复合物Ⅱ调控mtDNA外流的确切机制尚不明确;现有证据提示BH3-only蛋白可重塑复合物内VDAC通道构象,引发钙内流,进而驱动mtDNA释放。该研究另一意外发现:mtDNA释放是不依赖caspase的细胞死亡所必需的。VDAC1或VDAC2缺陷细胞虽然可以发生BAX‑BAK介导的细胞色素c外流,但无法释放mtDNA;在下游caspase激活被抑制的条件下,这类细胞可存活数日。在复合物Ⅱ存在时,清除mtDNA同样会削弱非caspase依赖型细胞死亡。该结果挑战了主流观点——过去认为不依赖caspase的细胞死亡,只是线粒体外膜通透化、细胞色素c释放继发线粒体功能损伤后的被动结局。不过,胞质mtDNA如何启动非caspase依赖的细胞死亡仍有待解析;已知胞质DNA感受器cGAS、Z‑DNA结合蛋白1(ZBP1)、干扰素诱导蛋白16(IFI16)并不参与该过程。
杨等人的研究说明,BAX‑BAK激活后可启动两种截然不同的细胞死亡模式,分别由不同BAX‑BAK复合物调控:一种以细胞色素c启动caspase活化,发生凋亡;另一种由mtDNA启动,激活某种未知胞质效应分子,发生不依赖caspase的细胞死亡。值得注意的是,前者为免疫沉默死亡,后者伴随强烈抗病毒免疫应答(5–7)。复合物Ⅱ介导的细胞死亡通路,可能是演化形成的后备防御机制,用来对抗携带caspase抑制剂、阻断凋亡小体通路的病毒与其他病原体。这类情况下机体需要启动强炎症应答(凋亡通常会抑制炎症),同时依靠一套不依赖caspase的安全失效死亡通路清除细胞。因此,组装复合物Ⅱ驱动mtDNA释放,可看作效应子触发型免疫:它识别病原体的活动信号(即caspase抑制)而启动,不同于高等生物最主要的模式——识别病原体相关分子模式的免疫(15)。在部分细胞(如神经元、心肌细胞)或某些肿瘤中,APAF1表达会发生表观遗传沉默,此时复合物Ⅱ启动的非caspase依赖型细胞死亡同样可能发挥作用。
本研究仍留有若干待解问题:识别胞质mtDNA并启动细胞死亡的核酸感受器是什么;复合物Ⅱ如何促进mtDNA外流、该过程是否受caspase调控。杨等人揭示的线粒体通透化新机制,为后续解析BAX‑BAK调控细胞死亡的精密调控网络,开辟了令人振奋的方向。
转载本文请联系原作者获取授权,同时请注明本文来自孙学军科学网博客。 链接地址: https://blog.sciencenet.cn/blog-41174-1557910.html
上一篇: 将蜂群视作超有机体,或将重塑现代养蜂业 欢迎参加科学网十佳博文评选活动! 主办单位:  支持单位:
主题:细胞|释放|细胞死亡|BAX‑BAK复合物