
科学网—携带免疫记忆的肠道免疫细胞会大规模迁移大脑
 精选
已有 324 次阅读
2026-9-16 06:17
| 系统分类: 海外观察
携带免疫记忆的 肠道免疫细胞会 大规模 迁移大脑
“肠胃致病菌”促使保护性免疫细胞从肠道奔赴大脑
来自肠道的免疫细胞会发生迁移,在小鼠体内 “记住”既往的胃部感染。
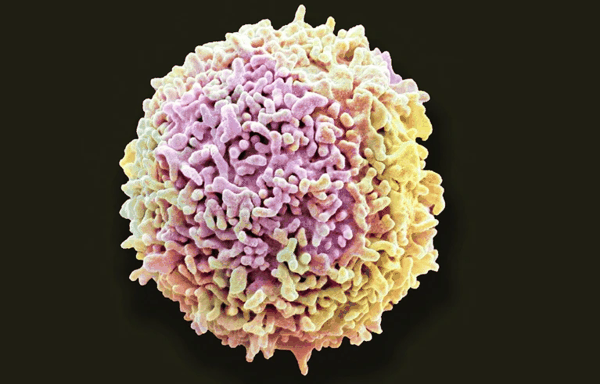
彩色扫描电子显微照片展示了处于静息状态的人类 T淋巴细胞——参与免疫防御的一种白细胞,背景为黑色。粉色、黄色与米白色凸显出细胞粗糙、纹理致密的表面。
部分免疫细胞会长途跋涉,从肠道迁移至包裹大脑的脑膜。图片来源:史蒂夫 ·格施梅斯纳/科学图片库/阿拉米图库
一项小鼠研究表明,对抗肠胃致病菌的免疫细胞能够从肠道迁移到大脑,并在大脑中建立针对既往感染的长久 “记忆”。
大脑受名为脑膜的保护膜保护, 脑膜可抵御血液中循环的病原体入侵中枢神经系统 。该研究中,当 小鼠感染会引发肠道疾病的常见细菌与寄生虫后,免疫细胞便从肠道迁移至脑膜 。抵达脑膜后,这些细胞定居下来;在初次感染一个多月后, 机体遭遇二次感染时,这些细胞就会发挥应答作用,说明它们留存了过往患病的记忆 。
美国马萨诸塞州剑桥市哈佛大学的神经免疫学家弗朗西斯科 ·金塔纳评价, 这项研究 “十分出色”,有助于科研人员进一步了解肠道与中枢神经系统如何相互作用。他表示:“该研究带来诸多研究方向”, 例如探究肠道感染如何影响神经系统疾病,以及利用这种肠道 ‑脑关联开发新型疗法。
该研究成果于上周发表在《自然 ‑神经科学》¹。
细胞踏上迁移之路
论文共同作者、英国剑桥大学临床科学家门娜 ·克拉特沃西介绍,既往研究已经发现,健康状态下,肠道中的部分免疫细胞也存在于脑膜中。但很少有研究去探究:应对胃肠道感染时,肠道和脑膜是否会共享同一批免疫细胞。
为解开这一疑问,克拉特沃西及其团队用多种可引发肠胃疾病的病原体感染小鼠,包括致食物中毒的鼠柠檬酸杆菌,以及引发血吸虫病的寄生虫 ——曼氏血吸虫。随后,研究人员对比了肠道与脑膜中的CD4⁺T细胞(这类细胞指挥其他免疫细胞对抗感染)。
感染之前, CD4⁺T细胞在脑膜免疫细胞中仅占很小比例。小鼠感染鼠柠檬酸杆菌三周后,肠道与脑膜内表达白介素‑17(IL‑17)蛋白的T细胞数量均出现激增;已知这类T细胞专门针对鼠柠檬酸杆菌。小鼠感染曼氏血吸虫六周后,肠道与脑膜两处组织内,靶向抵抗寄生虫的T细胞数量同样有所上升。
克拉特沃西团队对肠道和脑膜组织开展测序,发现两处组织存在完全相同的 T细胞受体,证明经肠道“训练”的T细胞,在感染发生后从消化道迁移到了脑膜。研究还发现,T细胞依靠被称为趋化因子的信号分子,顺着血流定向迁移至脑膜。
Intestinal infections establish antigen-specific, long-lived memory CD4 + T cells in the brain and meninges 论文 摘要
脑膜构成大脑与外周组织之间的边界,其内分布着丰富的免疫细胞网络。本研究证实,胃肠道刺激(胞内或胞外细菌、寄生虫)会重塑硬脑膜(脑膜外层)中 CD4⁺T细胞的特性,分别将其主导极化状态转变为1型辅助性T细胞(TH1)、17型辅助性T细胞(TH17)以及2型辅助性T细胞(TH2),并产生各不相同的细胞因子谱。该过程依赖CXCR6‑CXCL16通路,肠道活化的CD4⁺T细胞经此迁移至中枢神经系统,在硬脑膜静脉窦周围、硬脑膜淋巴聚集体内以及大脑实质中形成长寿命记忆细胞群。功能上,这些经口服抗原致敏的硬脑膜CD4⁺T细胞可产生快速、抗原特异性的回忆应答;静脉再次遭遇相同抗原刺激时,细胞发生增殖并分泌细胞因子。本研究结果揭示了肠道免疫与硬脑膜免疫之间的直接联系:中枢神经系统边界组织能够获得针对肠道微生物的免疫记忆。肠道微生物是一类主要的血源性病原体,可通过有孔的硬脑膜脉管系统侵入大脑。
正文
脑膜包裹大脑与脊髓,分为三层:外层硬脑膜、中间蛛网膜以及内层软脑膜。硬脑膜分布有静脉窦,负责引流来自下方大脑、上方颅骨骨髓以及头皮的血液;该血管网络包含有孔内皮,为循环中的微生物提供了一条入侵中枢神经系统( CNS)的途径¹⁻³。面对这一威胁,多种免疫细胞聚集在硬脑膜静脉窦周边⁴⁻⁶以及硬脑膜相关淋巴组织(DALT)聚集体内部⁷,其中就包括肠道来源的IgA浆细胞⁸;特定巨噬细胞亚群紧贴脑膜血管分布⁹。重要的是,脑膜免疫细胞除了防御中枢神经系统抵抗感染之外,还可通过分泌细胞因子对神经元功能施加影响¹⁰⁻¹³。
硬脑膜相关淋巴组织内的淋巴细胞能够感知循环免疫刺激物与鼻内嗜神经病原体,并被其激活 ⁷。但远端器官(例如肠道)的免疫刺激是否会改变硬脑膜免疫细胞,目前尚不明确。不过肠道炎症与中枢神经系统病变存在关联。例如,炎症性肠病(IBD)患者抑郁、焦虑的发病风险升高¹⁴⁻¹⁷。由炎症性肠病或肠道感染引发的肠道炎症,会促使CD4⁺T细胞向不同辅助性T细胞(TH)亚型极化;该过程受抗原呈递细胞分泌的细胞因子¹⁸、微生物代谢产物¹⁹⁻²⁰以及T细胞受体(TCR)信号强度²¹共同调控。根据所处环境不同,会产生TBET⁺、分泌干扰素‑γ(IFN‑γ)的TH1细胞;GATA‑3⁺、分泌白介素‑4/白介素‑13(IL‑4/IL‑13)的TH2细胞;或是RORγt⁺、分泌白介素‑17/白介素‑22(IL‑17/IL‑22)的TH17细胞,以此适配机体面临的主要免疫挑战²²。鉴于T细胞来源的细胞因子会切实影响大脑功能,胃肠道炎症与感染能否调控硬脑膜CD4⁺T细胞极化,是一个十分关键的科学问题。举例:小鼠模型中,CD4⁺T细胞分泌的IFN‑γ会影响社交行为¹⁰;T细胞特异性IL‑4缺陷会造成记忆与认知功能受损¹¹;γδ T细胞来源的IL‑17可以改善短期记忆¹²,但过量时会加重焦虑样行为¹³。
本研究采用多种方式处理小鼠:葡聚糖硫酸钠( DSS)诱导结肠炎(炎症性肠病动物模型)、口服胞外与胞内细菌,以及血吸虫感染(肠道寄生虫模型),以此分析肠道与硬脑膜的CD4⁺T细胞。结果发现:硬脑膜CD4⁺T细胞的极化模式与肠道保持一致。葡聚糖硫酸钠结肠炎、鼠柠檬酸杆菌感染会使硬脑膜内分泌IL‑17的TH17细胞增多;沙门氏菌感染、血吸虫感染则分别诱导硬脑膜出现TH1细胞与TH2细胞。硬脑膜CD4⁺T细胞亚群的这种改变,依赖于Cxcr6‑Cxcl16介导的细胞从肠道向中枢神经系统迁移;经肠道活化的抗原特异性T细胞分布在硬脑膜静脉窦周边区域以及脑实质的血管外间隙。当静脉再次给予相同抗原进行攻击,这些肠道来源的硬脑膜CD4⁺T细胞能够发生扩增并分泌细胞因子。本研究揭示了一套重要的肠‑中枢神经系统交流机制,该机制参与中枢神经系统抵御循环病原体的防御过程。
结果
肠道刺激塑造硬脑膜 CD4⁺T细胞的极化状态与细胞因子谱
硬脑膜体液免疫记忆的核心效应细胞是抗体分泌型浆细胞,这类细胞可在肠道完成发育驯化 ⁸。基于此我们提出假说:介导适应性细胞免疫的肠道活化、发生极化的CD4⁺T细胞,同样可以迁移定植至硬脑膜。
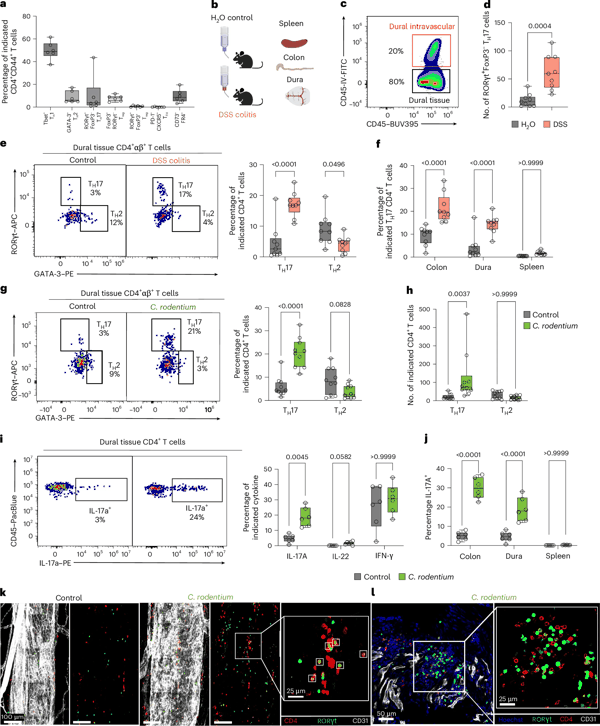
稳态条件下, αβ CD4⁺T细胞在硬脑膜免疫细胞中占比不高(扩展数据图1a),且大多为非初始T细胞;约半数细胞表达Tbet蛋白(图1a,扩展数据图1b‑f)。
葡聚糖硫酸钠( DSS)是一种渗透性致炎剂,能够破坏上皮屏障、促使肠道TH17细胞扩增²³。口服DSS处理后,和预期一致,小鼠结肠内RORγt⁺ TH17细胞显著上升;Foxp3⁺T细胞、TH1、TH2、T滤泡辅助细胞(TFH)、CD73⁺FR4⁺CD4⁺T细胞均无明显变化(图1c‑f,扩展数据图2a)。结肠TH17细胞扩增的同时,硬脑膜血管外区、静脉窦周围细胞聚集体、吻‑鼻侧硬脑膜相关淋巴组织(DALT)中的TH17细胞数量同步升高;而硬脑膜血管内区、脾脏的TH17细胞没有显著改变(图1c‑f,扩展数据图2a‑e)。
与之类似,口服感染鼠柠檬酸杆菌(一种黏附 ‑擦拭型致病菌,可诱导肠道TH17细胞应答²⁴)21天后,小鼠结肠、硬脑膜血管外区表达RORγt的CD4⁺T细胞显著增加(图1g、h,扩展数据图3a、b)。硬脑膜TH17细胞主要分泌IL‑17,胞内几乎检测不到IL‑22(图1i、j,扩展数据图3c)。IL‑17a阳性细胞的升高仅发生在CD4⁺T细胞,硬脑膜γδ T细胞、CD8⁺T细胞亚群并未出现该现象(扩展数据图3d‑f)。空间定位上,TH17细胞分布于硬脑膜静脉窦沿线以及吻‑鼻侧硬脑膜相关淋巴组织内部(图1k、l)。
值得注意:我们使用减毒突变株鼠柠檬酸杆菌( ΔEspO)进行口服攻毒,该突变株诱导肠道IL‑22分泌与中性粒细胞募集的能力较弱²⁵;但与野生型菌株相比,它诱导的硬脑膜TH17细胞扩增程度相近(图2a)。综合以上结果说明:肠道内被激活的CD4⁺T细胞会迁移至硬脑膜。
转载本文请联系原作者获取授权,同时请注明本文来自孙学军科学网博客。 链接地址: https://blog.sciencenet.cn/blog-41174-1552700.html
上一篇: 地下氢或将掀起绿色能源革命——前提是企业能够找到它 欢迎参加科学网十佳博文评选活动! 主办单位:  支持单位:
